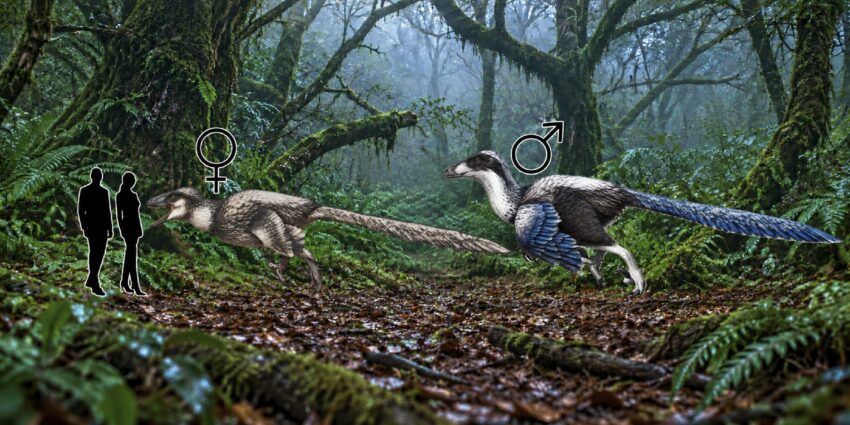
Name: Dakotaraptor steini („Steins Dakota-Räuber“)
Beschrieben: 2015 von Robert A. DePalma et al.
Ordnung: Theropoda; Familie: Dromaeosauridae
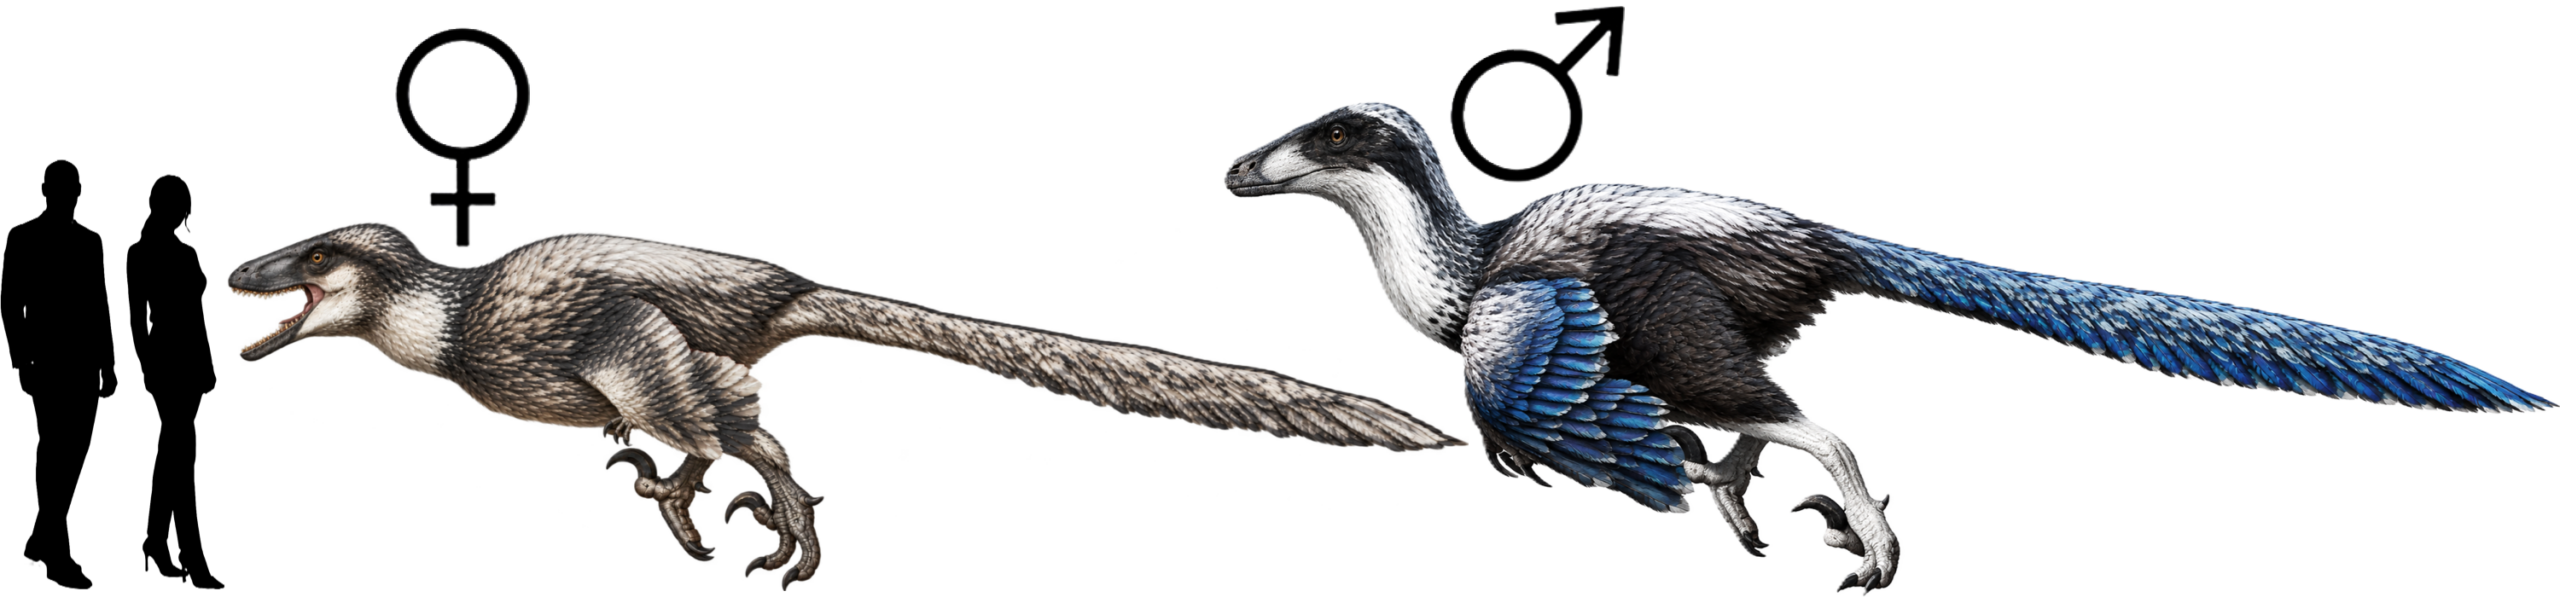
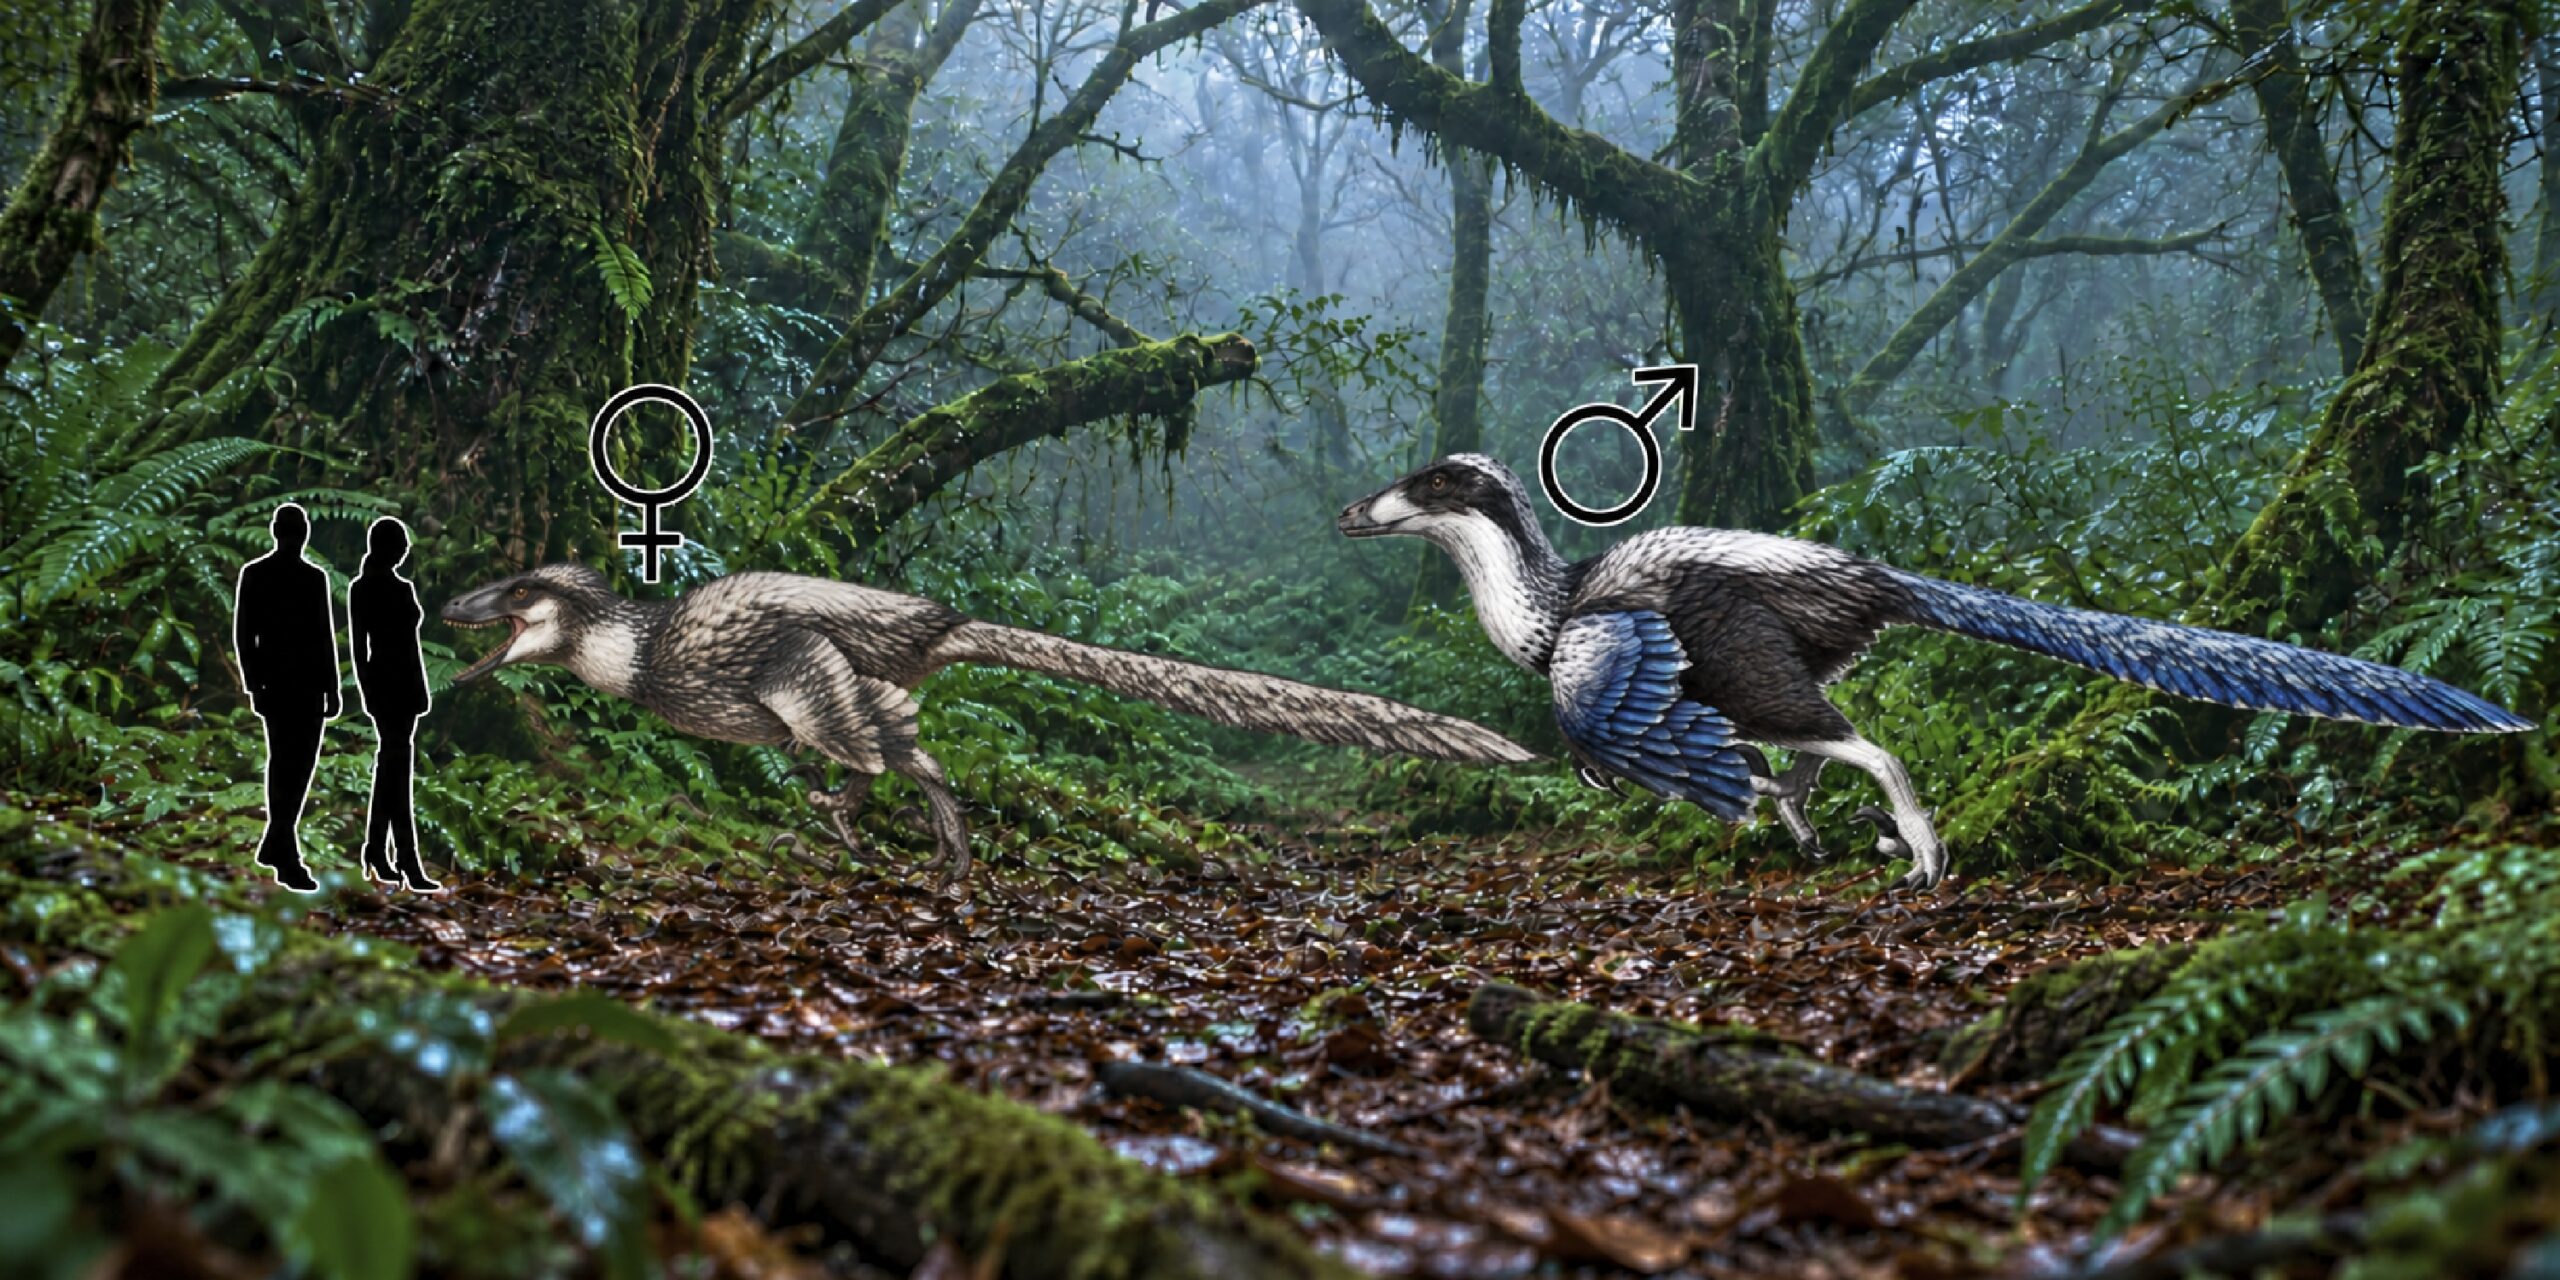
Länge: ♂ bis zu 5,6m, ♀ bis 5,2m
Gewicht: ♂ bis zu 300kg, ♀ bis zu 280kg
Ernährung: carnivor
Beschreibung:
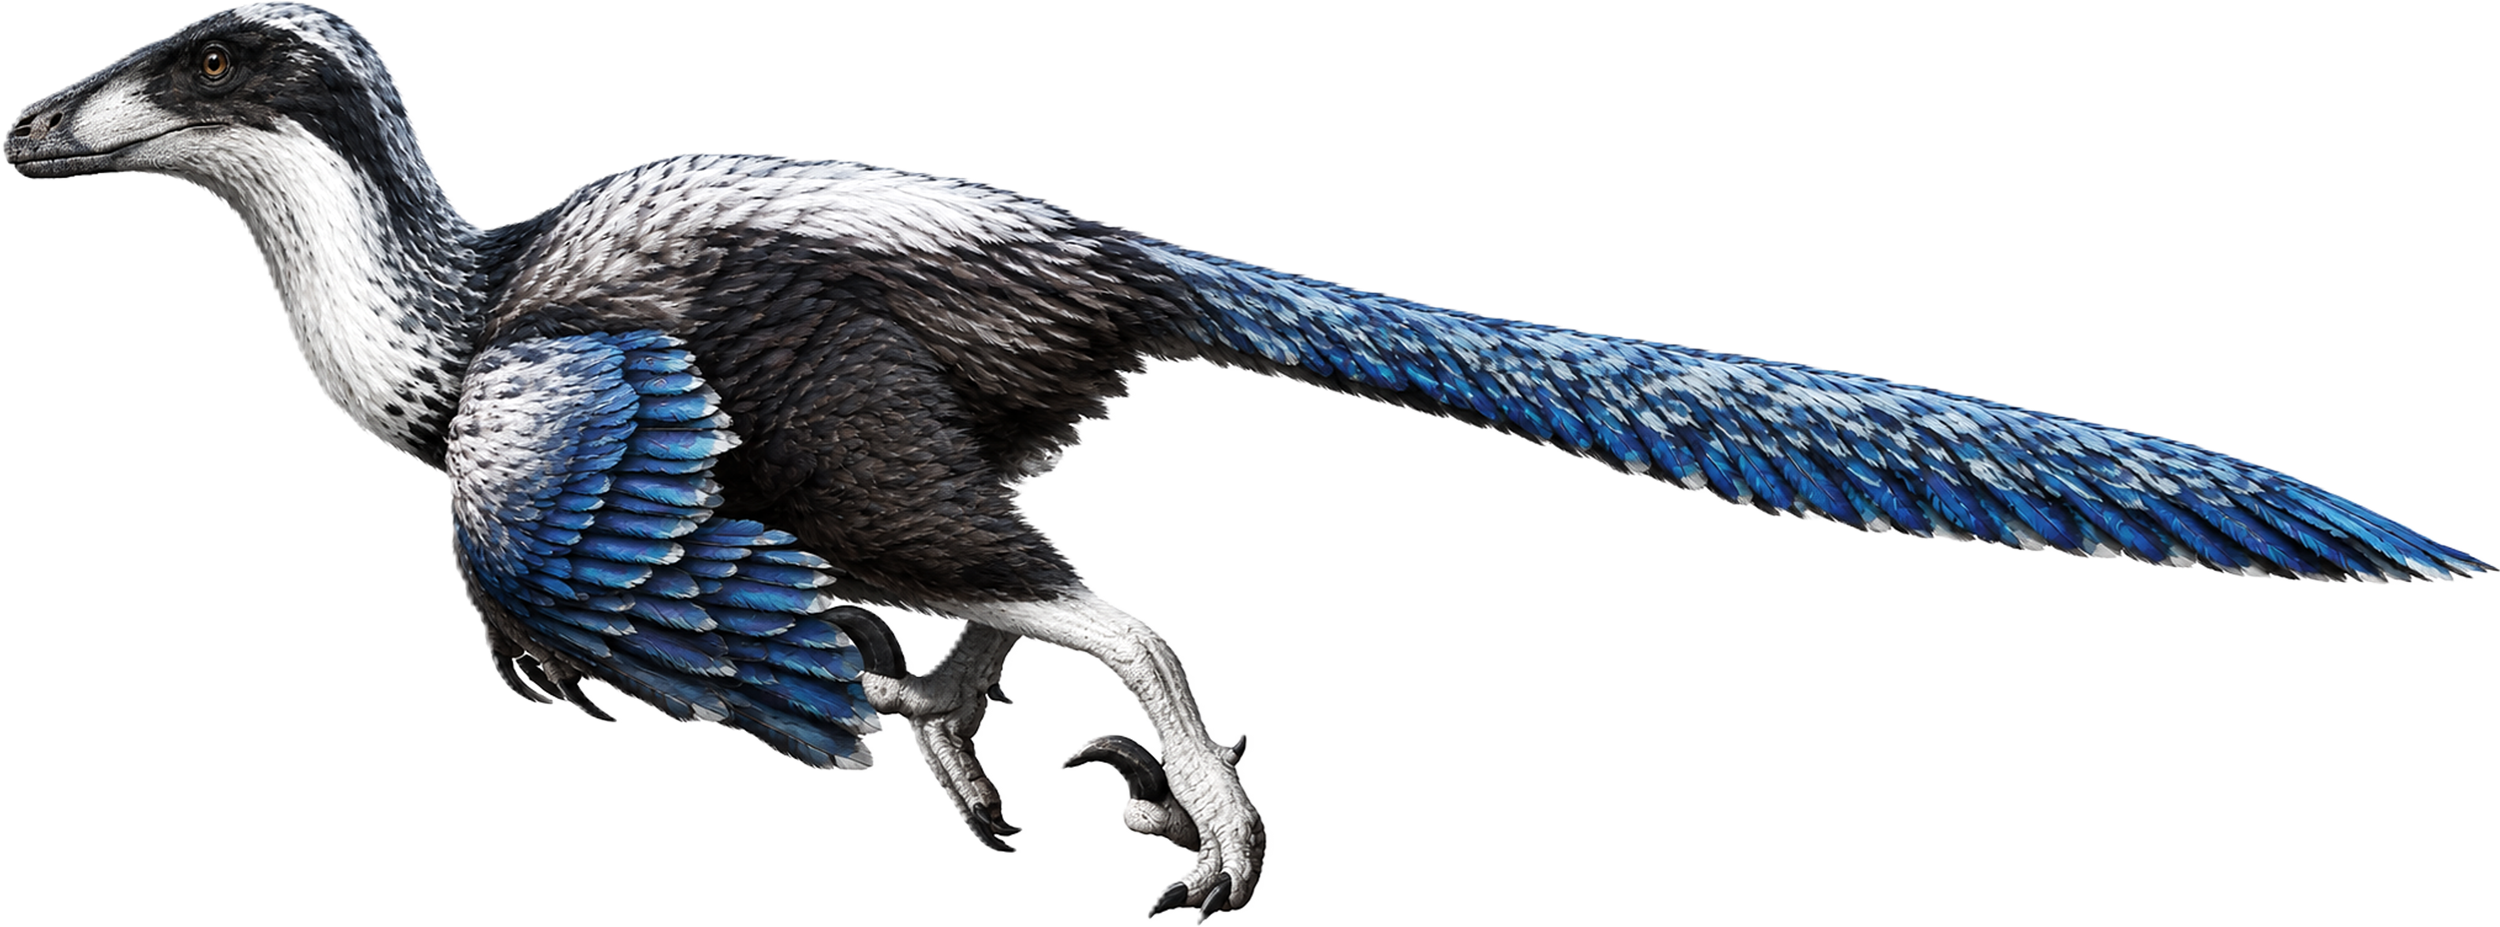
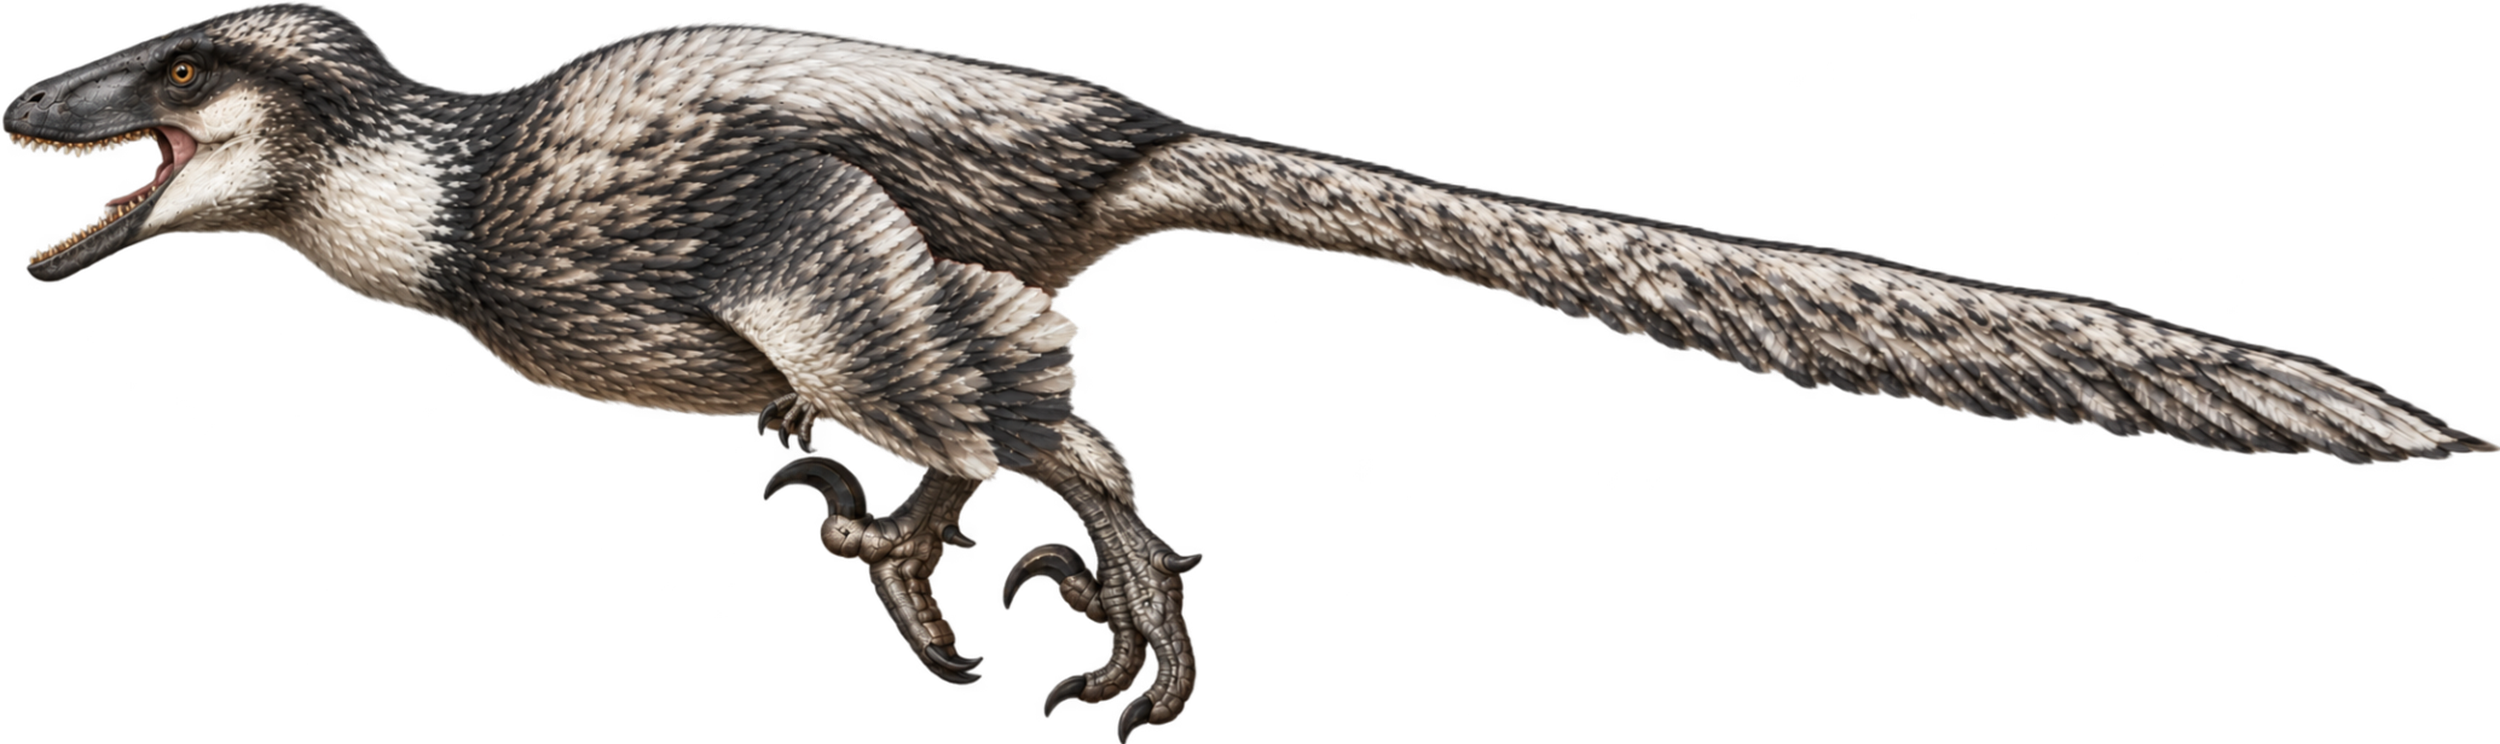
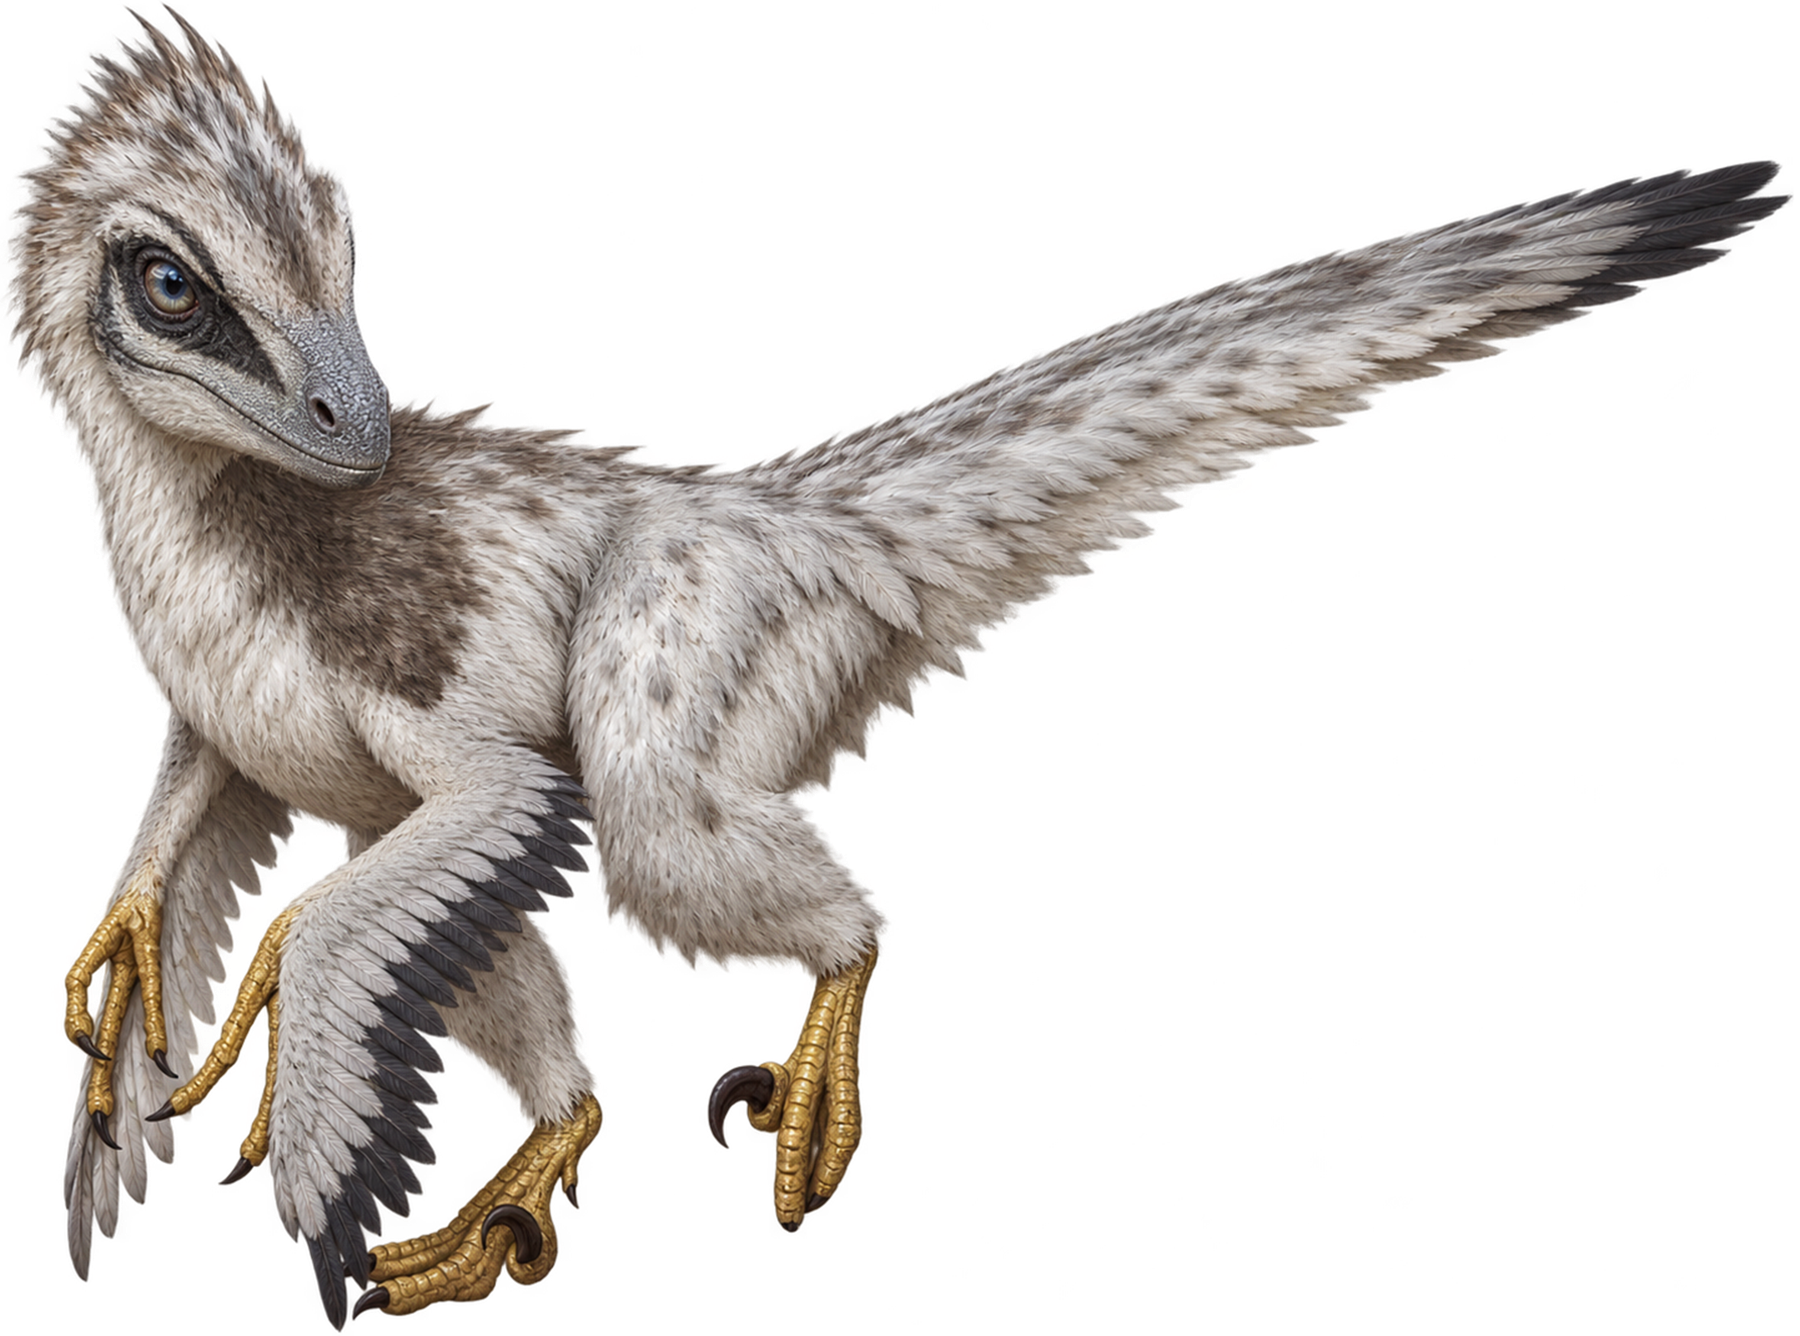
Dakotaraptor der zweitgrößte Beutegreifer von Hell Creek. Er hat nur den Tyrannosaurus zu fürchten, doch dem kann er in den dichten Bergwäldern und Hügelkämmen weiter landeinwärts gut aus dem Weg gehen, wo seine bevorzugten Jagdgründe liegen. Sein Revier markiert er mit kilometerweit hallenden, wie schauriges Geheul klingenden Warnrufen, die er sowohl zur Morgen- als auch Abenddämmerung ausstößt. Ansonsten kommunizieren die Tiere durch tiefe Brumm- und Klicklaute. Erstaunlich ist, dass Dakotaraptor für einen aktiven Jäger relativ auffällig gefärbt ist. Die Männchen haben einen silbrig-weißen Hals, ebenso helle Beine und strahlend blaue Arm- und Schwanzfedern. Bei den Weibchen sind diese Federn ebenfalls silbrig bis cremefarben, wenn auch insgesamt etwas matter und weniger auffällig.
Trotz ihres hellen Gefieders kann sich Dakotaraptor bei der Jagd beinahe unsichtbar machen. Im Licht des Morgengrauens und der Abenddämmerung werfen seine Federn kaum Reflexionen zurück. Auch bei Regen und Nebel sind die Tiere kaum zu sehen. Und da es in seinem Lebensraum oft verregnet oder neblig ist, gehört Dakotaraptor wohl zu den „unsichtbarsten“ Bewohnern Nordamerikas. Bekommt er aber einmal an einem sonnigen Tag eine vielversprechende Beute in ihre ausgezeichnete Nase, wälzt sich das Raptorenpaar im Staub, um sich in den Erdfarben zu tarnen, bevor die Pirsch beginnt. Entgegen der weitverbreiteten Meinung über Raptoren ist er jedoch kein Rudeltier. Er lebt stattdessen paarweise. Ein Männchen und ein Weibchen bleiben sich ihr ganzes Leben lang treu.
Lebensweise:
Dakotaraptor ist ein strategisch vorgehender Beutegreifer und geht meist in der Dämmerung auf die Jagd. Dabei pirscht er sich zuerst langsam an sein Opfer heran, um es in einem schnellen Angriff zu überwältigen. Trotz seines Gewichts von mehreren hundert Kilogramm ist er ein erstaunlich schneller Läufer. Er kann ein fliehendes Beutetier auch über kurze Distanz hetzen und ist in der Lage, weite und hohe Sprünge zu meistern. Am liebsten greift er aus dem Hinterhalt an, etwa aus der Krone eines Baumes. Er kann mehrere Meter tief hinabspringen, ohne sich zu verletzen. Die langen Federn an den Armen und am Schwanz bremsen den Sturz wie ein Fallschirm, lassen aber noch genug Wucht übrig, dass ein argloses Tier sofort zu Boden geht, wenn Dakotaraptor aus der Höhe zuschlägt. Die große Sichelkralle wird gezielt eingesetzt, um Atemwege oder Blutgefäße des Opfers zu durchstoßen, oder es am Boden festzuhalten, während die scharfen, nach hinten gebogenen Zähne zum Einsatz kommen. Zu seiner bevorzugten Beute zählen mittelgroße Pflanzenfresser wie Thescelosaurus und Pachycephalosaurus. Gelegentlich ist er aber auch hinter den Jungtieren viel größerer Dinosaurier her.
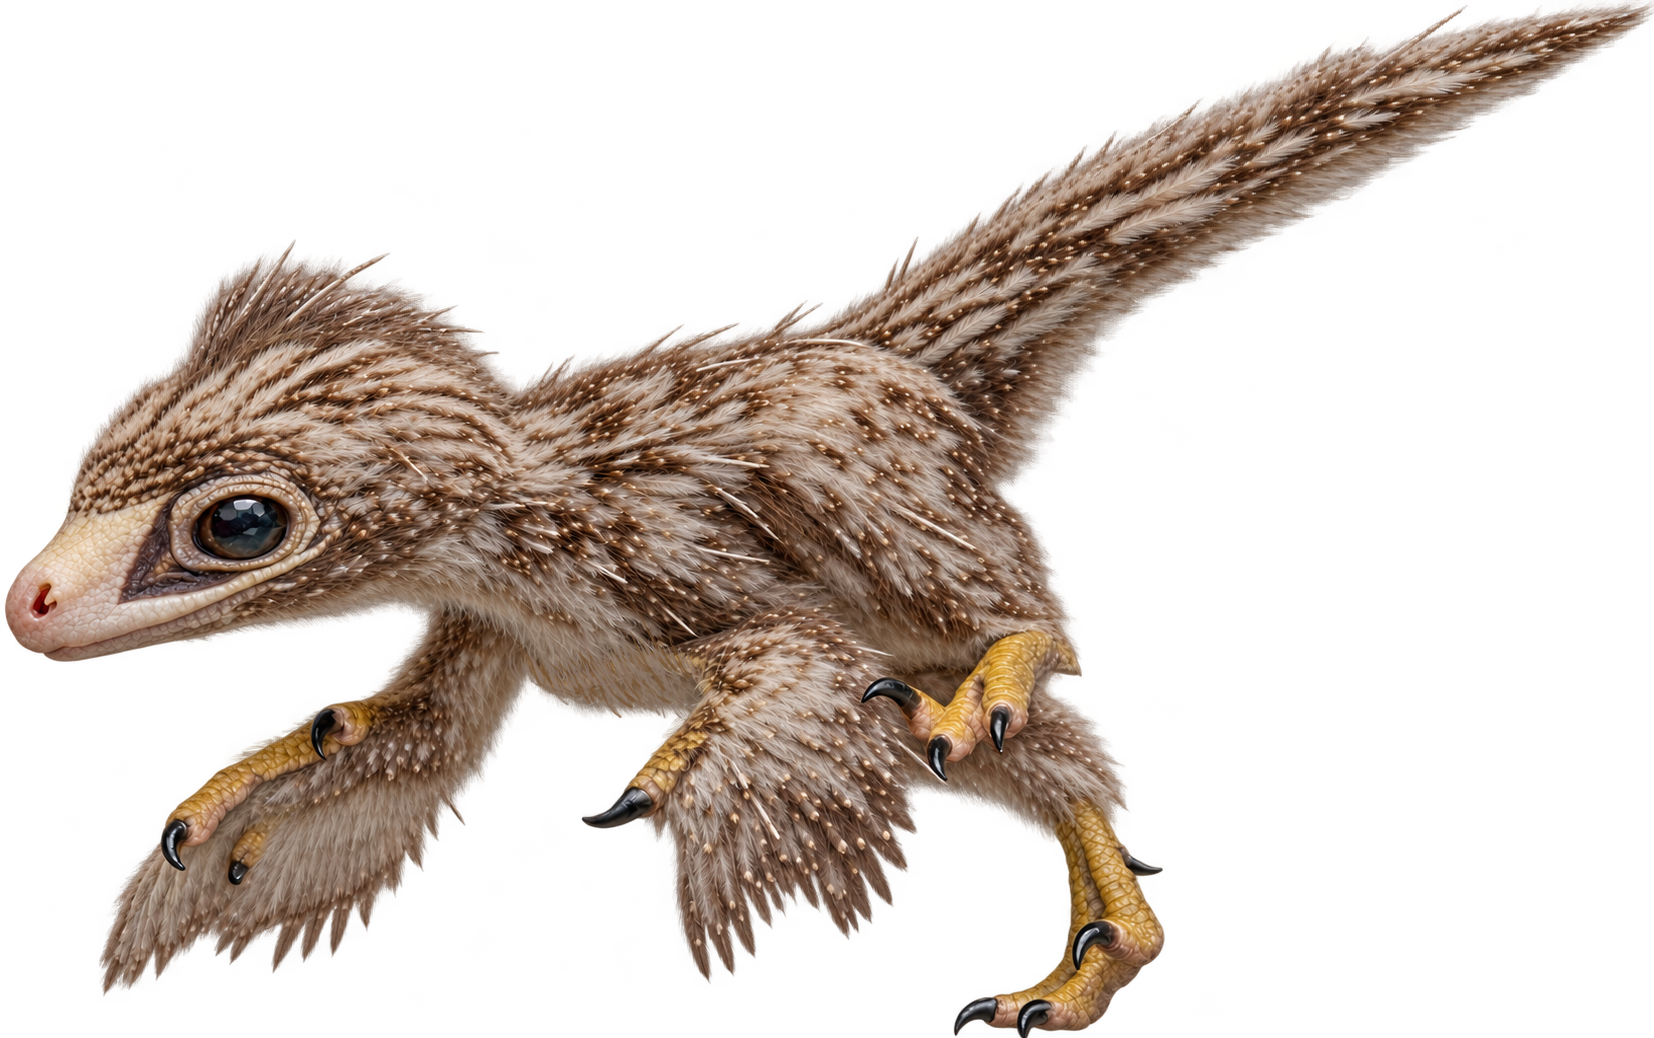
Im Frühjahr legen die beiden Elterntiere ein Nest an, meist in einer schwer zugänglichen Felsspalte, auf einer Anhöhe und gelegentlich sogar in einer Astgabel eines Baumes. Denn Dakotaraptor ist trotz seines Gewichts ein meisterhafter Kletterer. Das Weibchen legt dann zwei bis fünf Eier, die es unter seinen langen Armfedern eng an den Körper geschmiegt ausbrütet. Dabei wechselt es sich mit dem Männchen ab. Die Jungen bleiben bei ihren Eltern, bis sie selbstständig auf die Jagd gehen können, also meist nur einige Wochen nach dem Schlüpfen. Da die Jungraptoren aber gänzlich andere Beute bevorzugen als ihre erwachsenen Artgenossen, gehen sie ihnen schon bald aus dem Weg und stellen auch füreinander kaum eine Konkurrenz dar. Die Jungtiere sind weit geselliger als ihre erwachsenen Artgenossen und bleiben die ersten Jahre ihres Lebens meist in gegenseitiger Nähe, gelegentlich jagen sie auch gemeinsam größere Beute. Mit etwa acht Jahren sind sie ausgewachsen und begeben sich auf Partnersuche.
Dakotaraptor in Die Weißen Steine:
 |
Band II:Der kleine Razor, den John im Kapitel „Rettung“ findet, gesundpflegt, mit ihm in „Das Band“ etliche Abenteuer erlebt und ihn in „Der Zorn Gottes“ wieder verliert, ist ein junger Dakotaraptor. |
 |
Band III:Razor hat auch im dritten Band mehrere Auftritte. |
 |
Band IV:Neben Razor, der inzwischen kräftig gewachsen ist, treten in diesem Buch auch erstmals erwachsene Dakotaraptor-Exemplare auf. Im Kapitel „Das Tor zur Hölle“ hört und sichtet Katharina die Tiere aus der Ferne. Max hat mehrere, deutlich nähere Begegnungen: In „Die Geister des Lorbeerwaldes“ hört er sie zunächst in der Nacht und muss sich vor zwei riesigen, vogelartigen Raptoren verstecken. Später, in „Der lange Weg nach Hause“ läuft er ihnen direkt in die Arme. Die erwachsenen Tiere sind bereits gesättigt, da sie zuvor einen Pachycephalosaurus erbeutet haben, die Jungtiere setzen Max jedoch nach und bringen ihn zu Boden. In letzter Sekunde werden sie von den jungen Tyrannosauriern vertrieben, ein Dakotaraptor-Jungtier wird dabei jedoch getötet. |
Dakotaraptor in meinen Traumreise-Büchern:
 |
Die enorme Popularität, die der junge Dakotaraptor Razor bei Fans meiner Romanreihe genießt, war auch der Grund, ihn in meine Kinderbücher zu überführen. Tatsächlich ist der Razor, der in der ersten Traumreise in Mein traumhaftes Dinosaurierbuch auftaucht, nämlich der gleiche, der auch in Die Weißen Steine auftritt. Du begegnest ihm dort allerdings in der Zeit, wo er auf sich allein gestellt durch die Wildnis streift, nach dem schweren Wirbelsturm und getrennt von seinem menschlichen Freund John. |

 |
Hier geht’s zurück zur Hauptseite Leben in der Urzeit! |
Wissenschaftliches zu Dakotaraptor
 |
Die Beschreibung von Dakotaraptor fiel mitten in die Entstehungszeit meines Romans Die Weißen Steine. Voller Begeisterung habe ich die Entdeckung aufgegriffen und in meiner Geschichte verarbeitet. Ich habe diesen Dinosaurier sogar zum „Wappentier“ meiner Romanreihe gemacht. Doch inzwischen bestehen leider erhebliche Zweifel an seiner Existenz! Könnte es also „Razor“, eine Figur, die mir und vielen meiner Leser ans Herz gewachsen ist, etwa gar nicht gegeben haben? Hier möchte ich nun einen Überblick über die Forschungsgeschichte zu einem der kontroversesten (möglichen oder unmöglichen?) Bewohner der Hell Creek Formation geben. Was wissen wir wirklich über den Dakotaraptor? |
Entdeckung, Name und Fundmaterial
Als ich im Sommer 2015 mit den Recherchen für Die Weißen Steine begann, galt Tyrannosaurus rex noch als der einzige große Theropode seines Lebensraums. Neben einigen nur wenige Kilogramm schweren kleineren Räubern schien er sämtliche anderen größeren und auch die mittelgroßen Räuber verdrängt zu haben, so jedenfalls eine damalige Hypothese. Die Jungtiere von T. rex hätten im Laufe ihres Lebens die ökologischen Nischen aller größeren Fleischfresser nacheinander abgedeckt, während sie allmählich größer wurden.1Holtz, T. R., Jr. (2004). Taxonomic diversity, morphological disparity, and guild structure in theropod carnivore communities: implications for paleoecology and life history strategies in tyrant dinosaurs. Journal of Vertebrate Paleontology, 24(Supplement to 3), 72A.2Brusatte, S. L. et al. (2010). Tyrannosaur paleobiology: New research on ancient exemplar organisms. Science, 329(5998), 1481–1485. doi:10.1126/science.1193304
 Robert A. DePalma |
Doch am 31.10.2015, also genau an Halloween, stellte ein Team um Robert A. DePalma dieses Dogma in Frage. Sie beschrieben Dakotaraptor steini, dessen Überreste in einem Bonebed in der berühmten Hell Creek Formation gefunden wurde, genauer im Harding County in South Dakota.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Systematic Paleontology; Locality and horizon. doi:10.17161/paleo.1808.18764 Die ersten Fossilien dieses spektakulären Dromaeosauriern, nach dem älteren Utahraptor übrigens der zweitgrößte bekannte, waren dort bereits 2005 entdeckt worden.4DePalma, R. A. (2010). Geology, taphonomy, and paleoecology of a unique Upper Cretaceous bonebed near the Cretaceous-Tertiary Boundary in South Dakota. University of Kansas, 227 pp. |
Der Gattungsname nimmt, wie unschwer zu erkennen ist, Bezug auf den Bundesstaat, in dem der Dinosaurier gefunden wurde, aber auch auf das Volk der Dakota, das einst dort lebte. Der Artname ehrt Walter W. Stein, mit dem DePalma bereits jahrelang zusammengearbeitet hatte und der auch ein kommerzielles Grabungsunternehmen in South Dakota betreibt. Der Holotyp trägt die Nummer PBMNH.P.10.113.T. Er besteht aus einem Teilskelett eines erwachsenen Individuums, allerdings ohne Schädel. Erhalten sind ein Fragment eines Rückenwirbels, zehn Schwanzwirbel, beide Oberarmknochen, beide Ellen, beide Speichen, der erste und zweite Mittelhandknochen der rechten Hand, drei Krallen der linken Hand, der rechte Oberschenkelknochen, beide Schienbeine, das linke Sprungbein und Fersenbein, der zweite, dritte und vierte Mittelfußknochen des linken Fußes, der vierte Mittelfußknochen des rechten Fußes sowie die zweite und dritte Kralle des rechten Fußes. Die Elle besitzt laut Erstbeschreibung kleine Erhebungen, die als Federansatzstellen gedeutet wurden.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Holotype; Referred specimens. doi:10.17161/paleo.1808.18764
Neben den Überresten des Holotyps wurden an der Fundstelle auch noch weitere Knochen entdeckt, die ebenfalls Dakotaraptor zugeordnet wurden, jedoch eine schlankere Körperbauvariante repräsentierten. Dazu gehörten die Exemplare PBMNH.P.10.115.T (ein rechtes Schienbein), PBMNH.P.10.118.T (ein miteinander verbundenes linkes Sprung- und Fersenbein) sowie KUVP 152429, ursprünglich als Gabelbein identifiziert. Zusätzlich wurden vier einzelne Zähne zugeordnet: PBMNH.P.10.119.T, PBMNH.P.10.121.T, PBMNH.P.10.122.T und PBMNH.P.10.124.T. Diese Fossilien gehören heute zur Sammlung des Palm Beach Museum of Natural History. Weitere zugeordnete Fossilien sind KUVP 156045, ein einzelner Zahn, und NCSM 13170, ein drittes vermeintliches Gabelbein. Die ursprünglich als Gabelbeine von Dakotaraptor identifizierten Elemente waren U- bis V-förmig. Nach Ansicht der Erstbeschreiber ähnelten sie denen vieler anderer Dromaeosauriden, etwa Velociraptor, und sogar denen des großen spinosauriden Theropoden Suchomimus.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Holotype; Referred specimens. doi:10.17161/paleo.1808.18764

Skelettrekonstruktion des Holotyps von Dakotaraptor im Vergleich mit Silhouetten von Deinonychus und Velociraptor, die den Größenunterschied veranschaulicht. Bildquelle: Taphonomy / Wikimedia Commons.
Körperbau
Abgesehen von seiner beträchtlichen Größe sorgte die Beschreibung von Dakotaraptor auch aufgrund einiger interessanter Merkmale für großes Aufsehen. An der vierten Zehenkralle ist der Höcker, an dem die Sehne des Beugemuskels ansetzt, auffällig verkleinert. Die „Blutrinne“ an der Außenseite dieser Kralle ist zur Spitze hin über die Hälfte ihrer Länge vollständig von Knochen umschlossen und bildet dadurch eine knöcherne Röhre. Die zweite und dritte Zehenkralle besitzen an ihrer Unterseite scharfe Kiele. Die zweite Zehenkralle, die für „Raptoren“ typische Sichelkralle, erreicht ganze 29 % der Länge des Oberschenkelknochens. Am Schienbein ist die Crista fibularis, die Knochenleiste für den Kontakt mit dem Wadenbein, lang und zierlich. Ihre Höhe beträgt höchstens 9 % ihrer Länge. Ihr oberer Rand endet in einem Haken. Am zweiten Mittelhandknochen ist von den beiden Gelenkrollen, die mit dem Finger in Verbindung stehen, die innere nahezu ebenso groß wie die äußere. An seiner Außenseite befindet sich lediglich eine flache Rinne für das Band, das ihn mit dem dritten Mittelhandknochen verbindet. Bei flach gehaltenem Arm verläuft der Übergang zwischen der Gelenkfläche zum Handgelenk und der Oberseite des Knochenschafts in der Aufsicht gerade. Die Zähne besitzen an ihren hinteren Schneidekanten 15 bis 20 und an ihren vorderen Schneidekanten 20 bis 27 Zähnchen je 5 mm.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Holotype; Referred specimens. doi:10.17161/paleo.1808.18764
Wie für Theropoden üblich sind die Rückenwirbel stark pneumatisiert. Ihr Inneres besteht aus schwammartigem Knochengewebe mit zahlreichen Lufträumen. An den mittleren Schwanzwirbeln sind die vorderen Gelenkfortsätze, die Präzygapophysen, extrem verlängert. Ihre vollständige Länge wurde auf etwa 70 cm geschätzt, womit sie ungefähr zehn Wirbel überspannten. Dies trug zur Versteifung des Schwanzes bei. Die Arme waren relativ schlank, der Oberarmknochen etwas nach innen gebogen, und auch die Ellen, die offenbar lange, vogelähnliche Konturfedern trugen, sind nahezu vollständig überliefert. Damit wäre Dakotaraptor der größte Dromaeosaurier und überhaupt vogelähnliche Dinosaurier, für den ein solches Gefieder zumindest indirekt belegt ist. Die Flügelspannweite von Dakotaraptor wurde auf 120 cm geschätzt, allerdings ohne möglicherweise über die Hand hinausragende Handschwingen zu berücksichtigen. Fliegen konnte Dakotaraptor also nicht, allerdings könnten die „Flügel“ auch andere wichtige Funktionen erfüllt haben, etwa bei der Balz, bei der innerartlichen Kommunikation, beim Brüten und auch als „Bremsschirm“ und Stabilisator, wenn Dakotaraptor aus größerer Höhe absprang oder sich an einem Beutetier festkrallte.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Holotype; Referred specimens. doi:10.17161/paleo.1808.18764

Rekonstruiertes Skelett von Dakotaraptor im Dinosaur Resource Center, Colorado. Bildquelle: ケラトプスユウタ/Wikimedia Commons.
Die Beine von Dakotaraptor waren ebenfalls schlank und zierlich gebaut und verhältnismäßig lang für einen Dromaeosaurier. Sie unterscheiden sich deutlich von den robusten, gedrungenen Beinen von Utahraptor. Dakotaraptor ähnelt eher den beweglichen, sprungkräftigen kleineren Coelurosaurier und wahrscheinlich ein sehr schneller Läufer, der weite Schrittlängen erreichen konnte. Die Crista cnemialis, eine Knochenleiste am oberen Ende des Schienbeins, besitzt eine scharfe, nach vorn gerichtete Ecke. Die Fibularleiste endet in einem nach oben gerichteten, hakenförmigen Fortsatz, was innerhalb der gesamten Theropoda einzigartig ist. Sprungbein und Fersenbein, die oberen Fußwurzelknochen, sind miteinander verschmolzen und ähneln denen von Bambiraptor. An der Oberseite des Fersenbeins befindet sich nur eine kleine Gelenkfläche für das Wadenbein. Dies deutet darauf hin, dass dessen unteres Ende sehr schmal gewesen sein muss. Die Länge des Mittelfußes wurde auf 32 cm geschätzt, womit er im Verhältnis zum übrigen Bein recht lang war.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Holotype; Referred specimens. doi:10.17161/paleo.1808.18764
Die für Dromaeosauriden typische, aber ausgesprochen große und robuste Sichelkralle diente wahrscheinlich zum Töten oder Niederhalten von Beute. Sie ist seitlich abgeflacht und besitzt einen tropfenförmigen Querschnitt. Der Beugehöcker, eine große Erhebung nahe der Krallenbasis, diente als Ansatzstelle für die Beugemuskulatur. Je größer er war, desto größer war dem Text zufolge die Kraft bei einer Schlagbewegung. Bei Dakotaraptor ist dieser Höcker im Verhältnis zur Gesamtgröße der Kralle größer als bei anderen bislang gefundenen Dromaeosauriden, womit er sie wahrscheinlich mit höchster Kraft und Effizienz einsetzen konnte. Der Beugehöcker der dritten Zehenkralle ist dagegen nahezu nicht vorhanden und im Vergleich zu anderen Dromaeosauriden stark reduziert. Dies deutet auf eine geringere Beanspruchung dieser Kralle hin. Bei den erhaltenen Krallen handelt es sich nur um die knöchernen Kerne. Diese waren im Lebendbild auch zusätzlich noch von einer robusten Hornscheide aus Keratin umgeben, die über den Knochen hinausragte.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Holotype; Referred specimens. doi:10.17161/paleo.1808.18764

Die Zehenkrallen des Holotyps von Dakotaraptor mit den Beugehöckern (schwarze Pfeile), an denen die äußerst kräftige Muskulatur ansetzte. Der Beugehöcker der Tötungskralle ist sehr groß und robust, was auf eine hohe Kraft bei solchen Bewegungen hindeutet. Grau schattiert ist die hypothetische Keratinscheide, die beim lebenden Tier noch über dem Knochen lag. Bildquelle: Taphonomy / Wikimedia Commons.
Verwandtschaftsverhältnisse
Die kladistische Analyse in der Erstbeschreibung besagt, dass Dakotaraptor das Schwestertaxon von Dromaeosaurus gewesen sei. Beide bildeten wiederum gemeinsam mit Utahraptor eine Klade, deren nächstes Schwestertaxon Achillobator sei. Trotz seiner Verwandtschaft mit anderen großen Dromaeosauriden wurde angenommen, dass Dakotaraptor einen vierten unabhängigen Fall einer evolutionären Körpergrößenzunahme innerhalb dieser Gruppe repräsentierte, neben Deinonychus, Unenlagia sowie der gemeinsamen Entwicklungslinie von Achillobator und Utahraptor.3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Holotype; Referred specimens. doi:10.17161/paleo.1808.18764 In einer späteren Untersuchung von 2019 wurde Dakotaraptor dagegen in die Unenlagiidae gestellt,5Hartman, S. et al. (2019). A new paravian dinosaur from the Late Jurassic of North America supports a late acquisition of avian flight. PeerJ, 7, e7247. doi:10.7717/peerj.7247 einer Gruppe, die heute gar nicht mehr zu den „klassischen“ Raptoren zählt.6Wang, X. et al. (2026). Independent assembly of the flight apparatus in a non-avian dinosaur clade. Nature Communications, 17, 10074. doi:10.1038/s41467-026-77804-6 Sollte diese Einordnung zutreffen, wäre Dakotaraptor eine der am weitesten nördlich nachgewiesenen Gattungen dieser Gruppe. Im gleichen Jahr erkannte eine andere Analyse in Dakotaraptor allerdings wieder einen Vertreter der Eudromaeosauria.7Currie, P. J. & Evans, D. C. (2019). Cranial Anatomy of New Specimens of Saurornitholestes langstoni (Dinosauria, Theropoda, Dromaeosauridae) from the Dinosaur Park Formation (Campanian) of Alberta. The Anatomical Record, 303(4), 691–715. doi:10.1002/ar.24241 Bei der Beschreibung von Dineobellator wurde dies von den Autoren erneut als am wahrscheinlichsten betrachtet.8Jasinski, S. E., Sullivan, R. M. & Dodson, P. (2020). New Dromaeosaurid Dinosaur (Theropoda, Dromaeosauridae) from New Mexico and Biodiversity of Dromaeosaurids at the end of the Cretaceous. Scientific Reports, 10(1), 5105. doi:10.1038/s41598-020-61480-7
Dakotaraptor: eine Chimäre?
Doch inzwischen bestehen an der Gültigkeit von Dakotaraptor erhebliche Zweifel. So stellte sich nach und nach heraus, dass viele der ihm zugeschriebenen Knochen eventuell von ganz anderen, aber längst bekannten Tieren stammen könnten.
 Victoria M. Arbour |
Bereits 2015 stellten Victoria M. Arbour und Kollegen fest, dass die vermeintlichen Gabelbeine tatsächlich Teile eines Schildkrötenpanzers waren und Entoplastra, also Knochen des Bauchpanzers, der Weichschildkröte Axestemys darstellten.9Arbour, V. M. et al. (2016). The furculae of the dromaeosaurid dinosaur Dakotaraptor steini are trionychid turtle entoplastra. PeerJ, 4, e1691. doi:10.7717/peerj.1691 |
DePalma und Kollegen erkannten dies im Folgejahr sogar widerspruchslos an und schlossen diese Stücke aus dessen Hypodigma aus, also der Gesamtheit der einer Art zugeordneten Exemplare.10DePalma, R. A. et al. (2016). Corrigendum to: The First Giant Raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 16. doi:10.17161/1808.22120 Doch inzwischen bestehen auch Zweifel an nahezu jedem anderen Knochen von Dakotaraptor, ob er denn nun wirklich zu einem Dromaeosaurier gehört. Er könnte also niemals wirklich existiert haben und eine sogenannte Chimäre sein: ein fälschlicherweise konstruiertes „Fabelwesen“, das aus den Bestandteilen verschiedener anderer Tiere zusammengefügt wurde.
 Andrea Cau |
Einer der schärfsten Kritiker von Dakotaraptor ist Andrea Cau. Er stellte zuerst in seinem Theropoda Blog, 2024 schließlich aber auch in einer Fachpublikation seine Bedenken vor.11Cau, A. (2024). A Unified Framework for Predatory Dinosaur Macroevolution. Bollettino della Società Paleontologica Italiana, 63(1), 1–19. S. 7. doi:10.4435/BSPI.2024.08 |
Dabei verwies er einerseits auf unvollständige Schwanzwirbel, die Erhaltung der Armknochen, die Proportionen der Hinterbeine und strittige Merkmale der Krallen, wobei er die These aufstellte, dass sie genauso gut auch von Ornithomimosauriern und Caenagnathiden stammen könnten. Besonders an den gut überlieferten Armknochen fehlen ausgerechnet die für nähere Bestimmungen wichtigen Gelenkenden, was Cau als sehr verdächtig herausstellte. Sogar die große vermeintliche Sichelkralle hat Cau zufolge eben nicht die für Dromaeosaurier typische Asymmetrie der seitlichen Rinnen und stellt deshalb wahrscheinlich eher die Handkralle eines großen Oviraptorosauriers dar. Und nicht zuletzt kritisierte Cau, dass das nun in privater Sammlung befindliche Material anderen Forschern zur Überprüfung der Gültigkeit vorenthalten werde.11Cau, A. (2024). A Unified Framework for Predatory Dinosaur Macroevolution. Bollettino della Società Paleontologica Italiana, 63(1), 1–19. S. 7. doi:10.4435/BSPI.2024.08
Weitere Kontroversen um Robert DePalma
Die These, dass der von Robert DePalma beschriebene Dakotaraptor eine Chimäre und damit auch der zunehmend lauter werdende Vorwurf, dass er bloß ein öffentlichkeitswirksamer PR-Gag war, macht es mir schwer, Dakotaraptor wirklich noch als gültigen Dinosaurier in meiner Geschichte und Welt einzubinden. Denn nicht nur für Dakotaraptor ist Robert DePalma in scharfe Kritik geraten. Besonders bekannt ist er inzwischen nämlich vor allem für seine Forschungen an der Tanis-Fundstelle in North Dakota. Im Jahr 2021 veröffentlichte er eine Studie, in der er behauptete, sekundengenaue Einblicke in die Auswirkungen des Chicxulub-Asteroideneinschlags vor 66 Millionen Jahren zu bieten. Die Grundlage dafür waren sogenannte Tektite, also winzige Glaskügelchen, die durch die enorme Hitze des Einschlags entstanden, und die das Team in den Kiemendeckel mehrerer Fisch-Fossilien aus Tanis entdeckten.12DePalma, R. A. et al. (2019). A seismically induced onshore surge deposit at the KPg boundary, North Dakota. Proceedings of the National Academy of Sciences, 116(17), 8190–8199. doi:10.1073/pnas.1817407116
 Melanie During |
Doch von der niederländische Paläontologin Melanie During wurde DePalmas Arbeit scharf angegriffen. During, mit der DePalma zuvor eng zusammengearbeitet hatte, gab DePalma in ihrer eigenen Studie als Co-Autor mit an, da beide an der Tanis-Fundstätte arbeiteten und auf ähnliche Datenquellen zugriffen.13During, M. A. D. et al. (2021). Bone histology of acipenseriform fishes reveals seasonality during the final years of the Mesozoic. Research Square. doi:10.21203/rs.3.rs-646564/v1 |
Eine wissenschaftliche Fehde
Sie teilte ihre Ergebnisse und Analysen mit DePalma, in der Annahme, dass ihre Zusammenarbeit auf gegenseitigem Vertrauen beruhte. Doch während During an der Fertigstellung ihrer eigenen Studie arbeitete, beschleunigte DePalma offenbar den Veröffentlichungsprozess seiner eigenen Arbeit, sodass sein Paper zuerst erschien. In DePalmas Arbeit wird Durings Forschung auch gar nicht berücksichtigt, sie wird mit keinem Wort erwähnt. Dadurch wurde Durings Arbeit nicht nur in den Schatten gestellt, sondern auch die Glaubwürdigkeit ihrer Ergebnisse untergraben. In der Wissenschaft, wo Publikationszeitpunkte und Anerkennung von Beiträgen entscheidend für Karrieren sein können, ist ein solches Vorgehen besonders verletzend und schädlich, und es wird von During und anderen Wissenschaftlern als unfairer und unethischer Umgang mit wissenschaftlicher Zusammenarbeit empfunden.
Doch During, die sich ja bestens mit den Datenquellen auskennt, ließ dies nicht einfach auf sich sitzen. Sie stellte schließtlich in DePalmas Studie erhebliche Mängel fest und insbesondere die Herkunft und Genauigkeit der Isotopen-Daten infrage, die für die Studie zentral waren.14During, M. A. D. et al. (2024). Calibrations without raw data—A response to “Seasonal calibration of the end-cretaceous Chicxulub impact event”. PeerJ, 12, e18519. doi:10.7717/peerj.18519 Dabei erhob sie sogar den Vorwurf absichtlicher Datenfälschung.15Price, M. (2022). Paleontologist accused of faking data in dino-killing asteroid paper. Science, 6. Dezember 2022. Die schweren Vorwürfe stießen einen regelrechten Skandal an, der schließlich sogar in eine offizielle Untersuchung des Falls an der University of Manchester mündete, wo DePalma promovierte. Zwar konnte sich der Vorwurf auf absichtlichen Betrug dabei nicht erhärten. Allerdings hat DePalma die Datenquellen weder korrekt noch dem wissenschaftlichen Standard der Transparenz entsprechend angegeben. Statt unabhängiger Analysen basierten die verwendeten Daten auf älteren Untersuchungen, was nicht offengelegt wurde und somit durchaus als wissenschaftliches Fehlverhalten („scientific misconduct„) einzustufen ist.16Price, M. (2023). Dino extinction researcher committed research misconduct—but not fraud, university report finds. Science, 12. Dezember 2023.
DePalma selbst weist bis heute alle Vorwürfe zurück und argumentiert, dass die Fehler unbeabsichtigt waren und keinen Einfluss auf die zentralen Erkenntnisse seiner Arbeit haben. Dennoch forderte die Universität von Manchester ihn auf, die Arbeit zu korrigieren, um die Transparenz zu gewährleisten. Kritiker wie During sehen den Vorfall als symptomatisch für mangelnde Reproduzierbarkeit und Transparenz in der Paläontologie. Und auch als ernstes Resultat des zu großen Publikationsdrucks, der oft auf den Forschern lastet, der sie zum Umgehen und Verletzen wissenschaftlicher Standards verführt.
Gab es vielleicht doch einen großen Dromaeosaurier in Hell Creek?
Aber wie steht es nun um Dakotaraptor? Gab es ihn doch? Oder ist alles, was in meinen Büchern nun über ihn steht, purer Blödsinn? Weil ich weder die Traumreise-Geschichte noch die starken Dakotaraptor-Szenen aus meinen Romanen nicht einfach streichen kann, werde ich Razor und die wahrscheinlich bald als ungültig geführte Art „Dakotaraptor“ also in meinen Werken belassen. Ich habe dennoch den Anspruch, dass alle in meinen Büchern geschilderten Begebenheiten aus wissenschaftlicher Sicht haltbar und wenigstens plausibel sind. Doch wie erklärt man seinen Lesern, wie erklärt man gar fachlich versierten Experten, dass man an einem offenbar widerlegten und gar nicht existenten „Hauptcharakter“ festhält?
Nun, es gibt zumindest einige Argumente dafür, dass man die Existenz eines großen Dromaeosauriers während der späten Kreidezeit im westlichen Nordamerika vielleicht doch plausibel ist:
Argument I: Nordamerika ist groß, unser Kenntnisstand aber winzig!
Nordamerika ist nämlich ein wirklich riesiger Kontinent, mit unzähligen verschiedenen Lebensräumen. Und das war er auch schon in der Kreidezeit! Hell Creek- und auch die vielen anderen Formationen, die in Nordamerika aufgeschlossen sind, bilden aber nur einen winzigen Teil davon ab. Meist wurden diese Fundstellen in prähistorischen Küstengebieten abgelagert, wo seichte Schelfmeere, Sümpfe, Überschwemmungsebenen und Bruchwälder lagen, also sehr wasserreiche Lebensräume. Doch über alle anderen Gebiete, die in trockeneren Gegenden oder auf höherem Terrain lagen, ist kaum etwas bekannt.17Brown, C. M. et al. (2013). Evidence for taphonomic size bias in the Dinosaur Park Formation (Campanian, Alberta), a model Mesozoic terrestrial alluvial‐paralic system. Palaeogeography, Palaeoclimatology, Palaeoecology, 372, 108–122. doi:10.1016/j.palaeo.2012.06.02718Brown, C. M. et al. (2022). Size-driven preservational and macroecological biases in the latest Maastrichtian terrestrial vertebrate assemblages of North America. Paleobiology, 48(2), 210–238. doi:10.1017/pab.2021.35 Insbesondere über Appalachia, dem östlichen Teil Nordamerikas, ist unser Kenntnisstand sogar noch weit geringer, weil wir dort nur sehr wenige und noch kaum erforschte Fossillagerstätten vorfinden.19Brownstein, C. D. (2018). The biogeography and ecology of the Cretaceous non-avian dinosaurs of Appalachia. Palaeontologia Electronica, 21.1.5A, 1–56. doi:10.26879/801
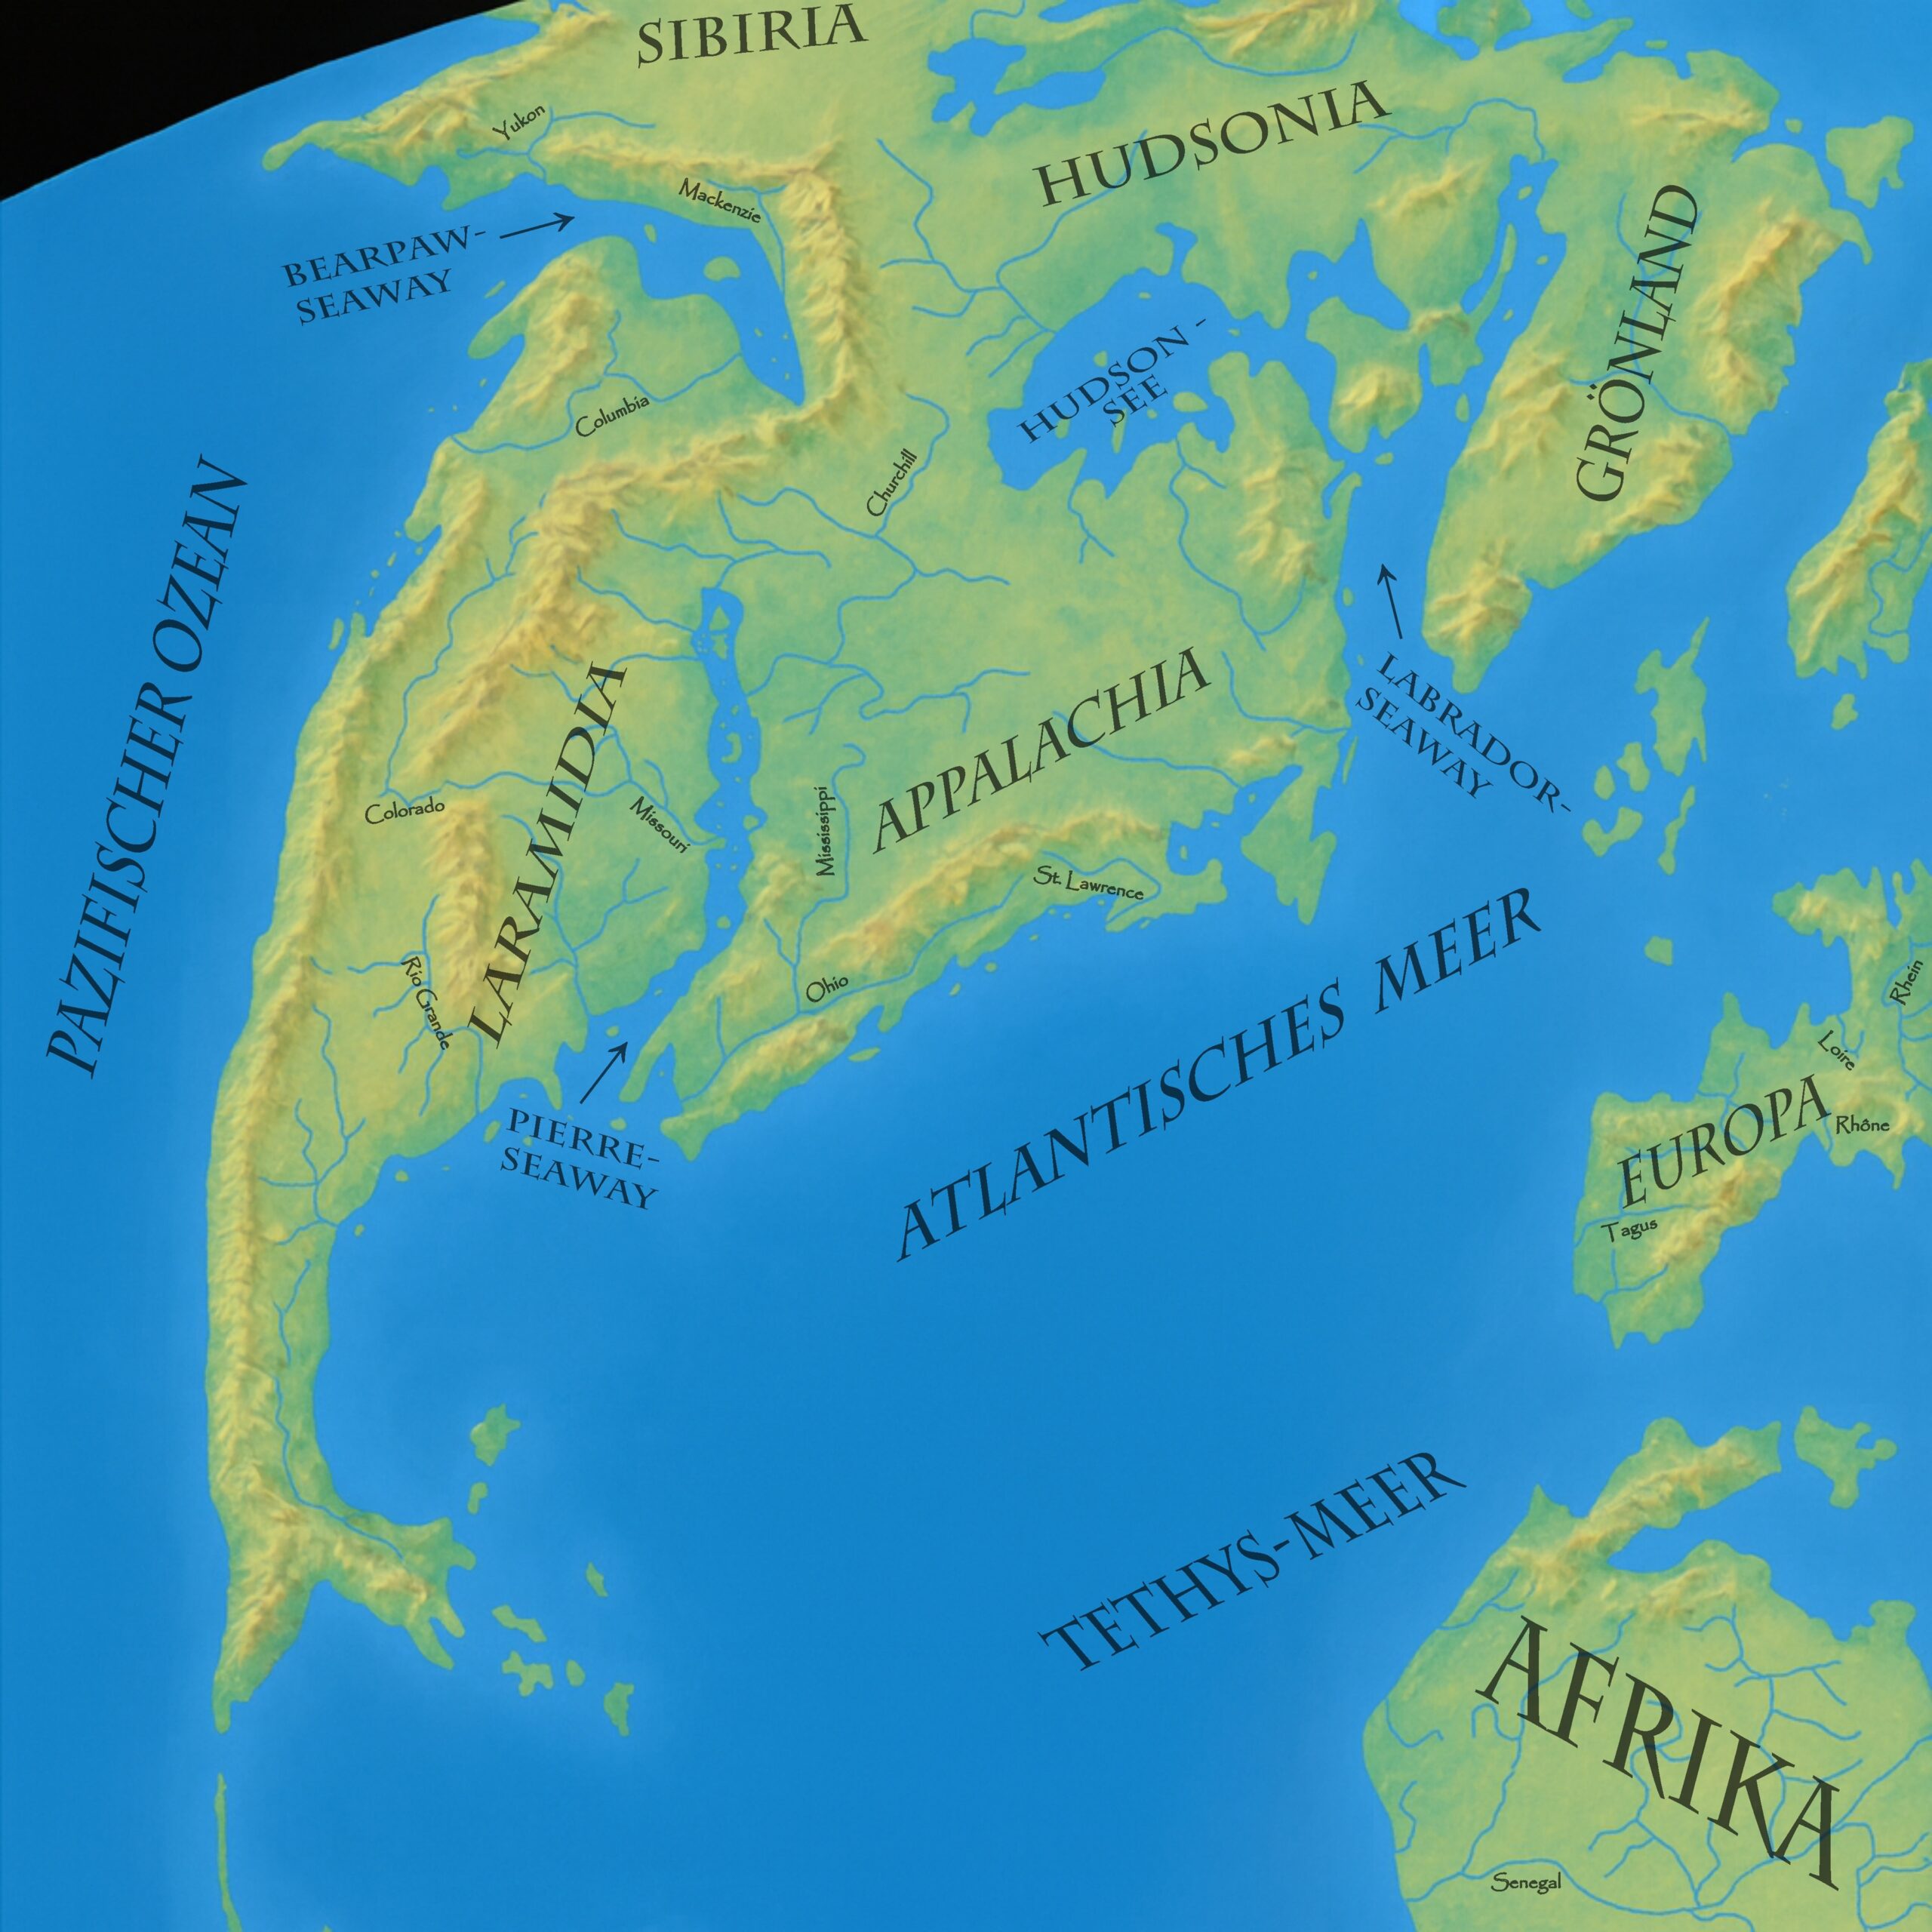
Argument II: Aus Waldgebieten haben wir kaum gute Fossilien!
Darauf baut mein zweites Argument direkt auf. Heute sind nämlich Wälder, insbesondere Regenwälder die artenreichsten Lebensräume der Erde. Nirgendwo sonst gibt es eine solche Vielfalt, wie etwa in Südostasien, dem Kongobecken oder vor allem dem Amazonasgebiet.20Myers, N. et al. (2000). Biodiversity hotspots for conservation priorities. Nature, 403, 853–858. doi:10.1038/35002501 In der Kreidezeit wird es kaum anders gewesen sein. Doch aus den damaligen Waldgebieten, vor allem nicht aus den Regenwäldern, kann man keine reichen Fossilfunde erwarten. Erstens bleiben die dort lebenden Lebewesen aufgrund der hohen Artendichte und des engen Netzwerks der Nahrungskette nur selten erhalten und gelangen in Sedimentflächen. Meistens nehmen Aasfresser und auch Mikrodestruenten im tropischen Klima einen Körper sehr schnell an und zehren ihn vollständig auf. Es ist somit besonders für kleine Tiere sehr unwahrscheinlich, zum Fossil zu werden: ein kleines Säugetier oder ein feingliedriger Vogel aus einem kreidezeitlichen Regenwald wurde in den allermeisten Fällen sehr rasch nach seinem Tod von einem größeren Tier gefressen.21Ponce, C. et al. (2010). Carcass removal by scavengers and search accuracy affect bird mortality estimates at power lines. Animal Conservation, 13, 603–612. doi:10.1111/j.1469-1795.2010.00387.x Hinzu kommen aber auch schlechte Erhaltungsbedingungen im Boden selbst: das Grundmilieu der meisten Regenwälder ist relativ sauer. Knochen lösen sich darin im Laufe der Zeit eher auf, anstatt zu mineralisieren und als Fossil erhalten zu bleiben.22Rosas, A. et al. (2022). The scarcity of fossils in the African rainforest. Archaeo-paleontological surveys and actualistic taphonomy in Equatorial Guinea. Historical Biology, 34(8), 1582–1590. doi:10.1080/08912963.2022.205722623Pacheco, M. L. A. F., Villagran, X. S. & Martins, G. R. (2012). Macroscopic and microbiological alterations of bird and small mammal bones buried in a Cerrado biome (south western Brazil). Journal of Archaeological Science, 39(5), 1394–1400. doi:10.1016/j.jas.2011.10.02424Keenan, S. W. & Beeler, S. R. (2023). Long-term effects of buried vertebrate carcasses on soil biogeochemistry in the Northern Great Plains. PLoS ONE, 18(11), e0292994. doi:10.1371/journal.pone.029299425Hedges, R. E. M. (2002). Bone diagenesis: an overview of processes. Archaeometry, 44(3), 319–328. doi:10.1111/1475-4754.00064 Auch für viele andere Lagerstätten und insgesamt für prähistorische Kleintiere gibt es deshalb einen gewissen sogenannten Bias: Weil sie deutlich seltener als Fossil überliefert werden, ist die Gefahr groß, dass sie für immer für den Fossilbericht verloren gehen.18Brown, C. M. et al. (2022). Size-driven preservational and macroecological biases in the latest Maastrichtian terrestrial vertebrate assemblages of North America. Paleobiology, 48(2), 210–238. doi:10.1017/pab.2021.3526Nanglu, K. & Cullen, T. M. (2023). Across space and time: A review of sampling, preservational, analytical, and anthropogenic biases in fossil data across macroecological scales. Earth-Science Reviews, 244, 104537. doi:10.1016/j.earscirev.2023.104537
Die Fossilisations-feindlichen Wälder bedeckten in der Kreidezeit vielleicht mehr als 70% der Landfläche Nordamerikas. Und wir haben deshalb keine Ahnung, wie die Ökosysteme darin konkret aufgebaut waren. Dass oder ob sie denen in Küsten- oder Bruchwaldgebieten überhaupt ähnelten, ist eine offene Frage. Wir kennen bislang lediglich etwa zwei Dutzend verschiedene Dinosaurier aus dieser Zeit in Nordamerika. Es könnte dort allerdings hunderte, wenn nicht gar tausende mehr Arten gegeben haben! Und warum nicht auch einen großen Dromaeosaurier?

Argument III: Es gibt durchaus große Dromaeosaurier-Fossilien aus Laramidia!
Aus der Lance Formation in Wyoming sind Fossilien bekannt, die unzweifelhaft von einem bislang nicht bestimmten, aber doch recht großen Dromaeosaurier stammen. Die Fossilien sind leider sehr spärlich und auch in keinem guten Erhaltungszustand, sie deuten aber auf ein Tier von mindestens 3m Länge hin. Damit sind sie deutlich größer als die bislang bekannten Funde anderer im gleichen Lebensraum lebender Dromaeosauriden, wie Saurornitholestes oder Acheroraptor. Lediglich der zeitgenössische, aber aus der südlicher liegenden Ojo Alamo Formation in New Mexico bekannte Dineobellator konnte ähnlich groß werden.8Jasinski, S. E., Sullivan, R. M. & Dodson, P. (2020). New Dromaeosaurid Dinosaur (Theropoda, Dromaeosauridae) from New Mexico and Biodiversity of Dromaeosaurids at the end of the Cretaceous. Scientific Reports, 10(1), 5105. doi:10.1038/s41598-020-61480-727Jasinski, S. E. et al. (2023). Osteology and reassessment of Dineobellator notohesperus, a southern eudromaeosaur (Theropoda: Dromaeosauridae: Eudromaeosauria) from the latest Cretaceous of New Mexico. The Anatomical Record, 306(7), 1712–1756. doi:10.1002/ar.25103 Könnte es dann nicht also doch noch eine weitere große, bislang vielleicht nur noch nicht beschriebene Raptoren-Art im nördlichen Laramidia gegeben haben?

Einige Forscher argumentieren, die Fossilien könnten auch von einem sehr großen Exemplar von Acheroraptor stammen, der aus der nahegelegenen Hell Creek Formation überliefert ist. Alle anderen Fossilien dieses Dromaeosauriers sind nämlich nicht besonders aufschlussreich. Sie basieren lediglich auf Zahnfunden und auf einem unvollständigen Unter- und Oberkiefer.28Evans, D. C., Larson, D. W. & Currie, P. J. (2013). A new dromaeosaurid (Dinosauria: Theropoda) with Asian affinities from the latest Cretaceous of North America. Naturwissenschaften, 100(11), 1041–1049. doi:10.1007/s00114-013-1107-5 Wir können außerdem nicht ausschließen, dass diese Funde von noch nicht ausgewachsenen Jungtieren stammen. Ein erwachsener Acheroraptor könnte demnach deutlich größer geworden sein. Allerdings war er wohl bei weitem nicht so groß wie der von DePalma postulierte Dakotaraptor. Und auch die in der Lance Formation gefundenen Überreste sind noch weit von solch gigantischen Ausmaßen entfernt. Immerhin gibt es also wenigstens Indizien für einen größeren Dromaeosaurier, der wenigstens in der Mitte zwischen Acheroraptor und „Dakotaraptor“ gelegen haben dürfte!29Cau, A. (2015). Dakotaraptor… un Acheroraptor gigante? Theropoda, 31. Oktober 2015. Wieso sollte es also nicht noch einen größeren gegeben haben?
Hier alle genannten Dromaeosaurier im Größenvergleich:

Argument IV: Es gibt durchaus Experten, die an Dakotaraptor festhalten!
Auch wenn ich selbst große, sogar sehr große Zweifel an der Gültigkeit des von DePalma beschriebenen Materials habe: es gibt mehrere renommierte Forscher außerhalb seiner Forschungsgruppe, die nach wie vor zu Dakotaraptor stehen und seine Gültigkeit verteidigen. Und zwar nicht aufgrund der Argumente, die ich eben schon genannt habe, sondern auf Basis eigener morphologischer Untersuchungen.
 Nick Longrich |
Einer von diesen Experten ist der renommierte Paläontologe Nick Longrich von der University of Bath, den ich zu genau diesem Thema befragt habe, und der sich freundlicherweise die Zeit nahm, mir auf das Dakotaraptor-Thema meine Fragen ausführlich zu beantworten: |
„Ich habe jahrelang die Schubladen im Tyrrell-Museum durchgesehen und gelernt, einzelne Knochen von Raubdinosauriern zu bestimmen – auf diese Weise habe ich Hesperonychus und Albertonykus entdeckt. Und ich kann mit Sicherheit sagen, dass Dakotaraptor eindeutig zu den Dromaeosauriden gehört. Die Kralle entspricht genau dem Bauplan der Eudromaeosaurier, und die Schwanzwirbel tragen die langen, verknöcherten Sehnen, die für diese Gruppe typisch sind. Die Knochen wurden gemeinsam gefunden, sind alle ähnlich groß und zeigen keine Doppelungen, was zu einem einzigen Individuum passt. Alle Elemente entsprechen nach meinem Eindruck eindeutig einem Dromaeosauriden, und keiner dieser Knochen lässt sich zweifelsfrei einer anderen Gruppe zuordnen.“
Als ich dann interessiert nachhakte, wurde er noch konkreter und widersprach Andrea Caus Thesen zum Teil scharf:
„Die langen verknöcherten Sehnen sind ein typisches Merkmal der Dromaeosaurier, und der betreffende Wirbel sieht überhaupt nicht wie der eines Ornithomimosauriers aus. Die Abbildung, auf die er sich bezieht, zeigt in Wirklichkeit einen Wirbel eines Deinocheiriden, den ich selbst beschrieben habe, und beide haben keinerlei Ähnlichkeit miteinander. Die Kralle besitzt den charakteristischen Querschnitt: Sie ist abgeflacht, mit einer runden Oberkante und einem scharfen Kiel an der Unterseite. Die Blutrinnen sind verdreht, sodass eine höher liegt als die andere. Das ist eindeutig die zweite Zehenkralle eines Dromaeosauriers und nicht ein Handknochen eines Caenagnathiden. Dieser Beitrag beruht auf Fantasie und Mutmaßungen, nicht auf sorgfältigem anatomischem Vergleich. Das ist keine echte Wissenschaft.
Man sollte bedenken, dass mehrere Datensätze, darunter jene zu Hesperornithoides und Dineobellator, dieses Tier untersucht und als Dromaeosaurier eingestuft haben. Die Veröffentlichung zu Dineobellator kam ebenfalls zu dem Ergebnis, dass es ein Dromaeosaurier sei. Das beweist zwar nicht zu hundert Prozent, dass die Zuordnung richtig ist, aber nun liegt die Beweislast eher darin zu zeigen, was diese Knochen sonst sein sollen, falls sie nicht zu einem Dromaeosaurier gehören. Man müsste die Knochen einzeln in eine Merkmalsmatrix einsetzen und überprüfen, und genau das ist bislang nicht geschehen. Das Holotyp-Material wurde als „Die zusammengehörigen Überreste eines erwachsenen Individuums“ beschrieben, also ausdrücklich als gemeinsam gefunden. Dieser Punkt ist wichtig und wird in solchen Diskussionen oft übersehen. Die Beschaffenheit des Holotyps, also gleich große Knochen ohne doppelte Elemente, stützt diese Aussage deutlich.“
Hier die ganze Unterhaltung zwischen mir und Nick Longrich im Original:
Fazit:
Aufgrund dieser Argumente bleibt es zumindest wissenschaftlich plausibel, dass in Die Weißen Steine gigantische Dromaeosaurier ihr Unwesen treiben. Und so wird meinen Leser der kleine Razor definitiv erhalten bleiben!
Quellenangaben:
- 1Holtz, T. R., Jr. (2004). Taxonomic diversity, morphological disparity, and guild structure in theropod carnivore communities: implications for paleoecology and life history strategies in tyrant dinosaurs. Journal of Vertebrate Paleontology, 24(Supplement to 3), 72A. ↩︎
- 2Brusatte, S. L. et al. (2010). Tyrannosaur paleobiology: New research on ancient exemplar organisms. Science, 329(5998), 1481–1485. doi:10.1126/science.1193304 ↩︎
- 3DePalma, R. A. et al. (2015). The first giant raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 14, 1–16. Systematic Paleontology; Locality and horizon. doi:10.17161/paleo.1808.18764 ↩︎
- 4DePalma, R. A. (2010). Geology, taphonomy, and paleoecology of a unique Upper Cretaceous bonebed near the Cretaceous-Tertiary Boundary in South Dakota. University of Kansas, 227 pp. ↩︎
- 5Hartman, S. et al. (2019). A new paravian dinosaur from the Late Jurassic of North America supports a late acquisition of avian flight. PeerJ, 7, e7247. doi:10.7717/peerj.7247 ↩︎
- 6Wang, X. et al. (2026). Independent assembly of the flight apparatus in a non-avian dinosaur clade. Nature Communications, 17, 10074. doi:10.1038/s41467-026-77804-6 ↩︎
- 7Currie, P. J. & Evans, D. C. (2019). Cranial Anatomy of New Specimens of Saurornitholestes langstoni (Dinosauria, Theropoda, Dromaeosauridae) from the Dinosaur Park Formation (Campanian) of Alberta. The Anatomical Record, 303(4), 691–715. doi:10.1002/ar.24241 ↩︎
- 8Jasinski, S. E., Sullivan, R. M. & Dodson, P. (2020). New Dromaeosaurid Dinosaur (Theropoda, Dromaeosauridae) from New Mexico and Biodiversity of Dromaeosaurids at the end of the Cretaceous. Scientific Reports, 10(1), 5105. doi:10.1038/s41598-020-61480-7 ↩︎
- 9Arbour, V. M. et al. (2016). The furculae of the dromaeosaurid dinosaur Dakotaraptor steini are trionychid turtle entoplastra. PeerJ, 4, e1691. doi:10.7717/peerj.1691 ↩︎
- 10DePalma, R. A. et al. (2016). Corrigendum to: The First Giant Raptor (Theropoda: Dromaeosauridae) from the Hell Creek Formation. Paleontological Contributions, 16. doi:10.17161/1808.22120 ↩︎
- 11Cau, A. (2024). A Unified Framework for Predatory Dinosaur Macroevolution. Bollettino della Società Paleontologica Italiana, 63(1), 1–19. S. 7. doi:10.4435/BSPI.2024.08 ↩︎
- 12DePalma, R. A. et al. (2019). A seismically induced onshore surge deposit at the KPg boundary, North Dakota. Proceedings of the National Academy of Sciences, 116(17), 8190–8199. doi:10.1073/pnas.1817407116 ↩︎
- 13During, M. A. D. et al. (2021). Bone histology of acipenseriform fishes reveals seasonality during the final years of the Mesozoic. Research Square. doi:10.21203/rs.3.rs-646564/v1 ↩︎
- 14During, M. A. D. et al. (2024). Calibrations without raw data—A response to “Seasonal calibration of the end-cretaceous Chicxulub impact event”. PeerJ, 12, e18519. doi:10.7717/peerj.18519 ↩︎
- 15Price, M. (2022). Paleontologist accused of faking data in dino-killing asteroid paper. Science, 6. Dezember 2022. ↩︎
- 16Price, M. (2023). Dino extinction researcher committed research misconduct—but not fraud, university report finds. Science, 12. Dezember 2023. ↩︎
- 17Brown, C. M. et al. (2013). Evidence for taphonomic size bias in the Dinosaur Park Formation (Campanian, Alberta), a model Mesozoic terrestrial alluvial‐paralic system. Palaeogeography, Palaeoclimatology, Palaeoecology, 372, 108–122. doi:10.1016/j.palaeo.2012.06.027 ↩︎
- 18Brown, C. M. et al. (2022). Size-driven preservational and macroecological biases in the latest Maastrichtian terrestrial vertebrate assemblages of North America. Paleobiology, 48(2), 210–238. doi:10.1017/pab.2021.35 ↩︎
- 19Brownstein, C. D. (2018). The biogeography and ecology of the Cretaceous non-avian dinosaurs of Appalachia. Palaeontologia Electronica, 21.1.5A, 1–56. doi:10.26879/801 ↩︎
- 20Myers, N. et al. (2000). Biodiversity hotspots for conservation priorities. Nature, 403, 853–858. doi:10.1038/35002501 ↩︎
- 21Ponce, C. et al. (2010). Carcass removal by scavengers and search accuracy affect bird mortality estimates at power lines. Animal Conservation, 13, 603–612. doi:10.1111/j.1469-1795.2010.00387.x ↩︎
- 22Rosas, A. et al. (2022). The scarcity of fossils in the African rainforest. Archaeo-paleontological surveys and actualistic taphonomy in Equatorial Guinea. Historical Biology, 34(8), 1582–1590. doi:10.1080/08912963.2022.2057226 ↩︎
- 23Pacheco, M. L. A. F., Villagran, X. S. & Martins, G. R. (2012). Macroscopic and microbiological alterations of bird and small mammal bones buried in a Cerrado biome (south western Brazil). Journal of Archaeological Science, 39(5), 1394–1400. doi:10.1016/j.jas.2011.10.024 ↩︎
- 24Keenan, S. W. & Beeler, S. R. (2023). Long-term effects of buried vertebrate carcasses on soil biogeochemistry in the Northern Great Plains. PLoS ONE, 18(11), e0292994. doi:10.1371/journal.pone.0292994 ↩︎
- 25Hedges, R. E. M. (2002). Bone diagenesis: an overview of processes. Archaeometry, 44(3), 319–328. doi:10.1111/1475-4754.00064 ↩︎
- 26Nanglu, K. & Cullen, T. M. (2023). Across space and time: A review of sampling, preservational, analytical, and anthropogenic biases in fossil data across macroecological scales. Earth-Science Reviews, 244, 104537. doi:10.1016/j.earscirev.2023.104537 ↩︎
- 27Jasinski, S. E. et al. (2023). Osteology and reassessment of Dineobellator notohesperus, a southern eudromaeosaur (Theropoda: Dromaeosauridae: Eudromaeosauria) from the latest Cretaceous of New Mexico. The Anatomical Record, 306(7), 1712–1756. doi:10.1002/ar.25103 ↩︎
- 28Evans, D. C., Larson, D. W. & Currie, P. J. (2013). A new dromaeosaurid (Dinosauria: Theropoda) with Asian affinities from the latest Cretaceous of North America. Naturwissenschaften, 100(11), 1041–1049. doi:10.1007/s00114-013-1107-5 ↩︎
- 29Cau, A. (2015). Dakotaraptor… un Acheroraptor gigante? Theropoda, 31. Oktober 2015. ↩︎
Hat dir dieser Beitrag gefallen?
Für noch mehr Lesestoff schau gerne in die Kategorie Meine Bücher. Alle meine Werke findest du auch in der Sidebar rechts. Dort gibt es auch einen Direktlink zu Amazon, wo du sie gleich bestellen kannst. ➡️
Wie kannst du Die Weißen Steine sonst noch unterstützen?
Klar, in erster Linie natürlich, wenn du dir eines meiner Bücher kaufst. Aber du kannst mir auch auf anderen Wegen eine große Freude machen:
- Teile diesen Beitrag auf deinen Social-Media-Kanälen!
- Schreibe mir eine nette Rezension auf Amazon!
- Kaufe hier auf der Website über Affiliate Links ein!
Ich kriege übrigens auch eine kleine Unterstützung, wenn du etwas völlig anderes kaufst. Es muss nicht unbedingt der hier beworbene Artikel sein! Jeder kleine Centbetrag hilft, diese Seite am Laufen zu erhalten.
 |
Zusammen mit meiner lieben Frau Sahar habe ich auch noch eine Menge mehr zu bieten! Sahar ist nämlich eine großartige Künstlerin und fertigt Gemälde, Lesezeichen, Stofftaschen und viele andere coole Artikel an. Auch mit tollen Urzeit-Motiven! Klick dich einfach mal durch die Beiträge in der Kategorie Produkte & Services. Bestimmt findest du da etwas nach deinem Geschmack. Oder auch ein schönes Geschenk für deine Lieben. |
Einen Grund, anderen eine Freude zu bereiten, findet man schließlich immer!